生化学や分子生物学、薬学のカリキュラムにおいて、多くの学習者が最初に直面する大きな壁が酵素反応速度論の基礎である「ミカエリス・メンテン式」です。微分方程式や見慣れないパラメータが並ぶ教科書を開き、数式の暗記に追われて本質を見失ってしまうケースは後を絶ちません。
しかし、背後にある物理的な現象や分子の振る舞いをイメージできれば、この式が極めて論理的で美しいモデルであることが実感できます。本稿では、基礎概念の直感的な理解から導出手順、パラメータの真の意味、そして試験や実験で必須となるプロット解析法まで、第一線の教育現場や研究アッセイの知見を交えて徹底的に解き明かします。
📌 【この記事の重要ポイントまとめ】
- 要点1:ミカエリス・メンテン式は、基質濃度と酵素反応速度の双曲線関係を「酵素基質複合体の形成と飽和」から説明する基本方程式である。
- 要点2:式の導出には「定常状態近似」が不可欠であり、Km(ミカエリス定数)やVmax(最大反応速度)は酵素の親和性や処理能力を定量化する決定打となる。
- 要点3:ラインウィーバー・バークプロットや阻害様式(競合阻害・非競合阻害)のグラフ変形を正しく捉えることで、生化学計算問題や創薬データの解析に直結する。
【基本概念】ミカエリス・メンテン式とは?直感的に掴む酵素反応の本質
ミカエリス・メンテン式は、酵素($E$)が基質($S$)と結合して酵素基質複合体($ES$)を形成し、生成物($P$)を放出して再びフリーな酵素に戻るという一連の触媒サイクルを数学的に表したものです。その基本式は以下のように表されます。
$v = \frac{V_{\max}[S]}{K_m + [S]}$
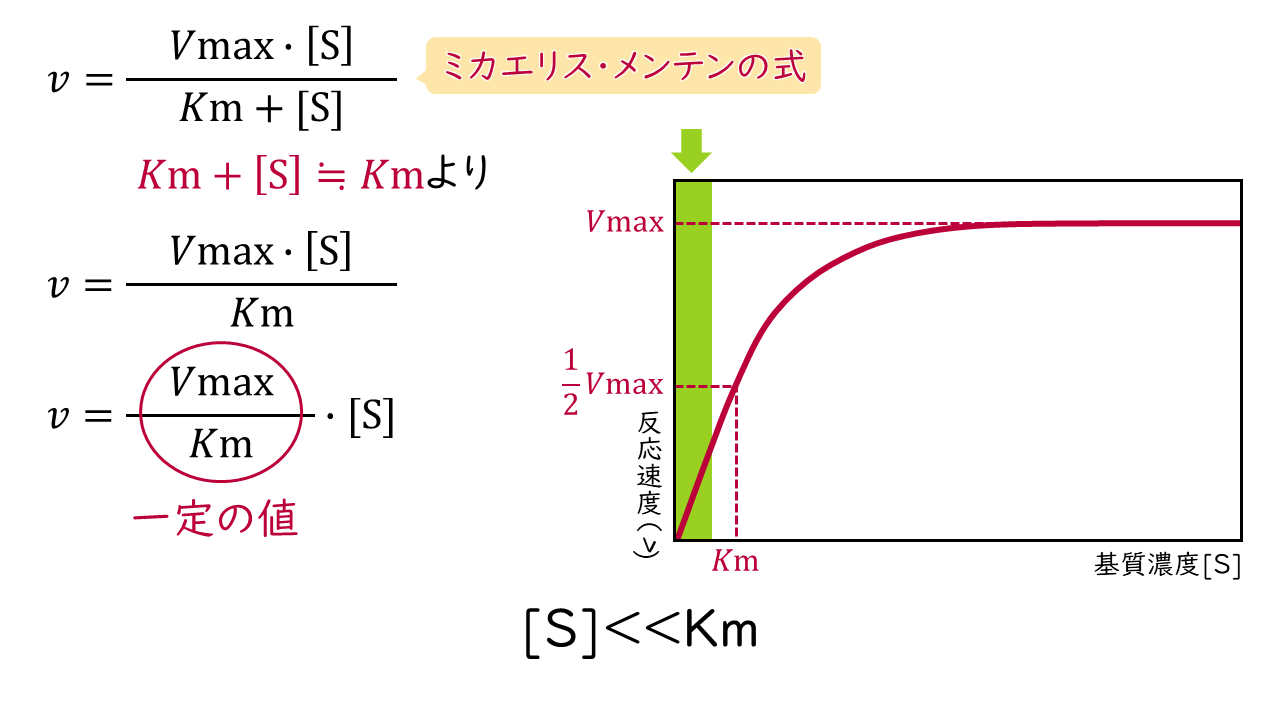
ここで、$v$は反応初速度、$[S]$は基質濃度、$V_{\max}$は最大反応速度、$K_m$はミカエリス定数を示します。この数式が描くグラフは「直角双曲線」となり、基質濃度が低いときは濃度に比例して速度が急激に立ち上がり、基質濃度が十分に高くなると一定の上限速度($V_{\max}$)へ漸近するという特徴を持ちます。
この現象を日常的な例えで理解するなら、「レジ打ちの作業」をイメージすると明快です。客(基質)がまばらな時間帯は、客が増えるほどレジを通る人数(反応速度)も直線的に増えます。しかし、長蛇の列ができるとレジ担当者(酵素)の手作業スピードがボトルネックとなり、客がそれ以上増えても処理速度は頭打ちになります。これが「酵素の飽和現象」の直感的なメカニズムです。
【ステップ解説】式の導出手順と「定常状態近似」を完全マスター
試験対策や学術理解において最も頻出するテーマが、式の導出手順です。歴史的には1913年のレオノール・ミカエリスとモード・メンテンによる「平衡論(急速平衡近似)」から始まりましたが、現代の生化学で標準となっているのは、1925年にジョージ・ブリッグスとジョン・ホールデンが提唱した定常状態近似を用いたアプローチです。
反応スキーム: $E + S \underset{k_{-1}}{\overset{k_1}{\rightleftharpoons}} ES \xrightarrow{k_2} E + P$
導出は、以下の5つの明確なステップで進行します。
ステップ1:各素反応の速度定数を定義する
結合反応($E + S \rightarrow ES$)の速度定数を$k_1$、解離反応($ES \rightarrow E + S$)の速度定数を$k_{-1}$、生成物生成反応($ES \rightarrow E + P$)の速度定数を$k_2$(あるいは触媒定数$k_{\text{cat}}$)と置きます。
ステップ2:全酵素濃度の保存則を立てる
系内に存在する遊離の酵素濃度を$[E]$、複合体濃度を$[ES]$、添加した総酵素濃度を$[E]_0$とすると、常に$[E]_0 = [E] + [ES]$が成り立ちます。したがって、$[E] = [E]_0 - [ES]$と表せます。
ステップ3:定常状態近似を適用する
反応開始直後のごく短い時間を除き、複合体$[ES]$の生成速度と分解速度は釣り合い、$[ES]$の濃度変化量はゼロとみなせます($\frac{d[ES]}{dt} = 0$)。 $$k_1 [E][S] = (k_{-1} + k_2)[ES]$$
ステップ4:複合体濃度$[ES]$について解く
$[E] = [E]_0 - [ES]$を代入して式を整理します。 $$k_1 ([E]_0 - [ES])[S] = (k_{-1} + k_2)[ES]$$ $$k_1 [E]_0 [S] = (k_1 [S] + k_{-1} + k_2)[ES]$$ $$[ES] = \frac{k_1 [E]_0 [S]}{k_1 [S] + k_{-1} + k_2} = \frac{[E]_0 [S]}{[S] + \frac{k_{-1} + k_2}{k_1}}$$ ここで、定数項をまとめたものをミカエリス定数$K_m = \frac{k_{-1} + k_2}{k_1}$と定義します。
ステップ5:反応速度の式を完成させる
生成物の生成速度$v$は$v = k_2 [ES]$で決まります。また、すべての酵素が基質と結合したときの理論上の最高速度が最大反応速度$V_{\max} = k_2 [E]_0$です。これらを代入することで、基本式$v = \frac{V_{\max}[S]}{K_m + [S]}$が美しく導かれます。
【パラメータの物理的意味】Km・Vmax・kcatを完全比較
数式を計算できること以上に重要なのが、各パラメータが実験データ上で何を意味しているのかを読み解く力です。特に$K_m$と$V_{\max}$、そして触媒効率kcatの関係性は、創薬スクリーニングや酵素改変工学の現場でも最重要指標として扱われます。
ミカエリス定数$K_m$の最も重要な数学的性質は、「反応速度が$V_{\max}$のちょうど半分($v = \frac{1}{2}V_{\max}$)に達するときの基質濃度」である点です。式に$[S] = K_m$を代入すると$v = \frac{V_{\max} \cdot K_m}{K_m + K_m} = \frac{V_{\max}}{2}$となることからも明白です。つまり、$K_m$値が小さい酵素ほど、ごくわずかな基質濃度でも素早く飽和に達するため、「基質に対する親和性が高い」と評価されます。
| パラメータ名 | 数式・定義 | 単位の目安 | 生化学的な本質・解釈 |
|---|---|---|---|
| ミカエリス定数($K_m$) | $(k_{-1} + k_2) / k_1$ | $\text{mol/L}$($\text{M}$), $\text{mM}$, $\mu\text{M}$ | 基質親和性の指標。値が小さいほど低濃度で機能する。 |
| 最大反応速度($V_{\max}$) | $k_2 [E]_0$ または $k_{\text{cat}} [E]_0$ | $\text{mol}/(\text{L}\cdot\text{s})$, $\mu\text{M}/\text{min}$ | 酵素が全飽和したときの限界速度。酵素総濃度に比例。 |
| ターンオーバー数($k_{\text{cat}}$) | $V_{\max} / [E]_0$ | $\text{s}^{-1}$, $\text{min}^{-1}$ | 1分子の酵素が1秒間に変換できる基質分子数(触媒回転数)。 |
| 触媒効率(特異性定数) | $k_{\text{cat}} / K_m$ | $\text{M}^{-1}\text{s}^{-1}$ | 酵素の総合的性能。拡散律速限界($10^8 \sim 10^9$)で究極進化。 |
【作図法と解析】ラインウィーバー・バークプロットと阻害様式の見極め
ミカエリス・メンテン式をそのままプロットすると双曲線になるため、グラフから目視で正確な$V_{\max}$や$K_m$を読み取ることは困難です。そこで考案されたのが、式の両辺の逆数を取って一次関数(直線)に変換するラインウィーバー・バークプロット(二重逆数プロット)です。
$\frac{1}{v} = \frac{K_m}{V_{\max}} \cdot \frac{1}{[S]} + \frac{1}{V_{\max}}$
このプロットにおいて、横軸を$\frac{1}{[S]}$、縦軸を$\frac{1}{v}$とすると、直線関係が得られます。この直線の特徴は以下の通りです。
- y切片: $\frac{1}{V_{\max}}$ (切片の逆数が最大反応速度)
- x切片: $-\frac{1}{K_m}$ (切片の絶対値の逆数がミカエリス定数)
- 傾き: $\frac{K_m}{V_{\max}}$
なお、低濃度領域の実験誤差が逆数によって過大に強調されるラインウィーバー・バークプロットの弱点を補う手法として、イーディー・ホフスティープロット($v$ 対 $v/[S]$ のプロット)なども用いられます。
さらに、薬剤探索において欠かせないのが競合阻害・非競合阻害の判別です。ラインウィーバー・バークプロット上での直線の動きを見れば、阻害剤がどの部位に作用しているかが一目瞭然となります。
- 競合阻害(拮抗阻害): 阻害剤が活性部位に基質と競合して結合する。基質濃度を極限まで上げれば阻害を克服できるため、$V_{\max}$は変化せず、$K_m$が見かけ上増大する(y切片が同じで、傾きが急になりx切片が原点に近づく)。
- 非競合阻害(非拮抗阻害): 阻害剤が活性部位以外の場所(アロステリック部位など)に結合し、触媒能を落とす。基質をどれだけ増やしても最大速度は回復しないため、$K_m$は不変で、$V_{\max}$が見かけ上低下する(x切片が同じで、y切片が上方にシフトする)。
- 不競合阻害: 阻害剤が$ES$複合体にのみ結合する。$K_m$も$V_{\max}$も同じ比率で減少するため、平行線を描いてシフトする。
【実態検証】生化学計算問題の落とし穴と研究現場のリアル
定期試験や大学院入試、薬剤師国家試験などの生化学計算問題において、多くの受験生が失点する原因は「数式の暗記不足」ではなく、「単位の換算ミス」と「前提条件の誤認」にあります。
大学の教育現場や実験指導を行う教員へのヒアリングによると、学生がつまずく典型的なパターンとして以下の3点が挙げられます。
- 濃度の単位不一致: 基質濃度$[S]$が$\text{mM}$で与えられているのに、$K_m$が$\mu\text{M}$表記になっているケース。単位を揃えずにそのまま代入して計算が破綻するミスが頻発しています。
- 「初速度($v_0$)」の前提崩壊: ミカエリス・メンテン式は「生成物がまだほとんどできておらず、逆反応($P \rightarrow S$)を無視できる極初期の速度」を対象としています。実験で反応時間を長く取りすぎ、基質消費や生成物阻害が起きたデータを式に当てはめてしまい、正しいパラメータが得られないトラブルが後を絶ちません。
- コンピュータ解析の普及とグラフ用紙のギャップ: 現代の研究現場では、生データを直接フィッティングする「非線形最小二乗法(GraphPad PrismやPython、Rなど)」による解析が標準です。しかし、基礎理論の理解度を測る試験では依然としてラインウィーバー・バークプロットの手計算が問われるため、両者のアプローチの差異を整理しておく必要があります。
一般に知られていない盲点とネット上の誤解
ネット上の簡易的な解説記事や動画では、分かりやすさを優先するあまり、学術的に不正確な説明が拡散されているケースが見受けられます。特に注意すべき2つの盲点を是正します。
誤解1:「Kmは酵素と基質の結合力(解離定数Kd)と完全に一致する」という俗説
定常状態近似の定義式を見れば明らかなように、$K_m = \frac{k_{-1} + k_2}{k_1} = \frac{k_{-1}}{k_1} + \frac{k_2}{k_1} = K_d + \frac{k_2}{k_1}$です。触媒速度$k_2$が解離速度$k_{-1}$に対して無視できるほど小さい場合($k_2 \ll k_{-1}$)に限り、$K_m \approx K_d$(解離定数)となり、真の親和性を反映します。しかし、$k_2$が大きい酵素では、$K_m$は親和性だけでなく反応回転の速さも含んだ見かけの値となります。
誤解2:「すべての酵素がミカエリス・メンテン式に従う」という思い込み
ヘモグロビンやアスパラギン酸カルバモイルトランスフェラーゼのように、複数のサブユニットを持ち協同性を示す「アロステリック酵素」は、基質濃度に対してS字状(シグモイド型)の曲線を描きます。これらはミカエリス・メンテンモデルではなく、ヒルプロットやMWCモデルで記述される別領域の現象です。単量体で独立した活性部位を持つ酵素にのみ適用できるモデルである点を見落としてはなりません。
【プロの結論】確実に理解を深める学習ルートと判断基準
ミカエリス・メンテン式を学ぶ際は、「丸暗記で済ませようとするアプローチ」は最も避けるべき選択肢です。一度本質的な導出ロジックを自力で紙に書き起こし、グラフの切片の意味を物理現象と結びつけて理解した学習者は、阻害実験データの解釈や高度なシグナル伝達速度論へ進んでも決して迷うことがありません。
【ミカエリス メンテン 式】に関するよくある質問(FAQ)
Q1:Kmの値が小さい酵素と大きい酵素では、どちらが優秀ですか?
A1:一概にどちらが優秀とは言えませんが、目的によって評価が分かれます。$K_m$が小さい酵素は、低濃度の基質でも敏感に反応を開始できるため「高親和性」です。一方、いくら$K_m$が小さくても$k_{\text{cat}}$(1秒あたりの処理能力)が低ければ全体の処理速度は遅くなります。酵素の総合的な触媒性能を比較する場合は、$K_m$単体ではなく「触媒効率($k_{\text{cat}} / K_m$)」を指標として判断します。
Q2:競合阻害剤の存在下で基質濃度を無限大に近づけるとどうなりますか?
A2:反応速度は阻害剤が存在しない場合と同じ$V_{\max}$に達します。競合阻害剤は酵素の同じ活性部位を奪い合っているだけなので、周囲の基質分子の数が圧倒的に多くなれば、阻害剤が酵素に衝突・結合する確率が実質的にゼロに近付くためです。
Q3:なぜ現代の研究でもラインウィーバー・バークプロットが教えられているのですか?
A3:現代のデータ処理自体は非線形回帰分析で行われますが、ラインウィーバー・バークプロットは「阻害様式(競合・非競合・不競合)の定性的な違いを視覚的に一瞬で識別できる」という教育的・概念的メリットが非常に高いため、現在も世界中の生化学教育で必須項目として扱われています。
まとめ:酵素反応速度論を武器にするためのロードマップ
ミカエリス・メンテン式は、一見すると無機質な文字の羅列に見えるかもしれませんが、その本質は「分子同士が衝突し、手を取り合って変化していくドラマ」を極めて明快に定式化したものです。
定常状態近似のステップを自らの手でトレースし、$K_m$や$V_{\max}$が語る物理的意味を把握すること。そしてラインウィーバー・バークプロットを通じて阻害剤の挙動を見通す力を養うこと。この強固な土台があれば、生化学の試験対策はもちろんのこと、将来の創薬アッセイ解析や生命科学研究の現場において強力な武器となるはずです。 (出典: ミカエリス メンテン 式(Yahoo!ニュース))
