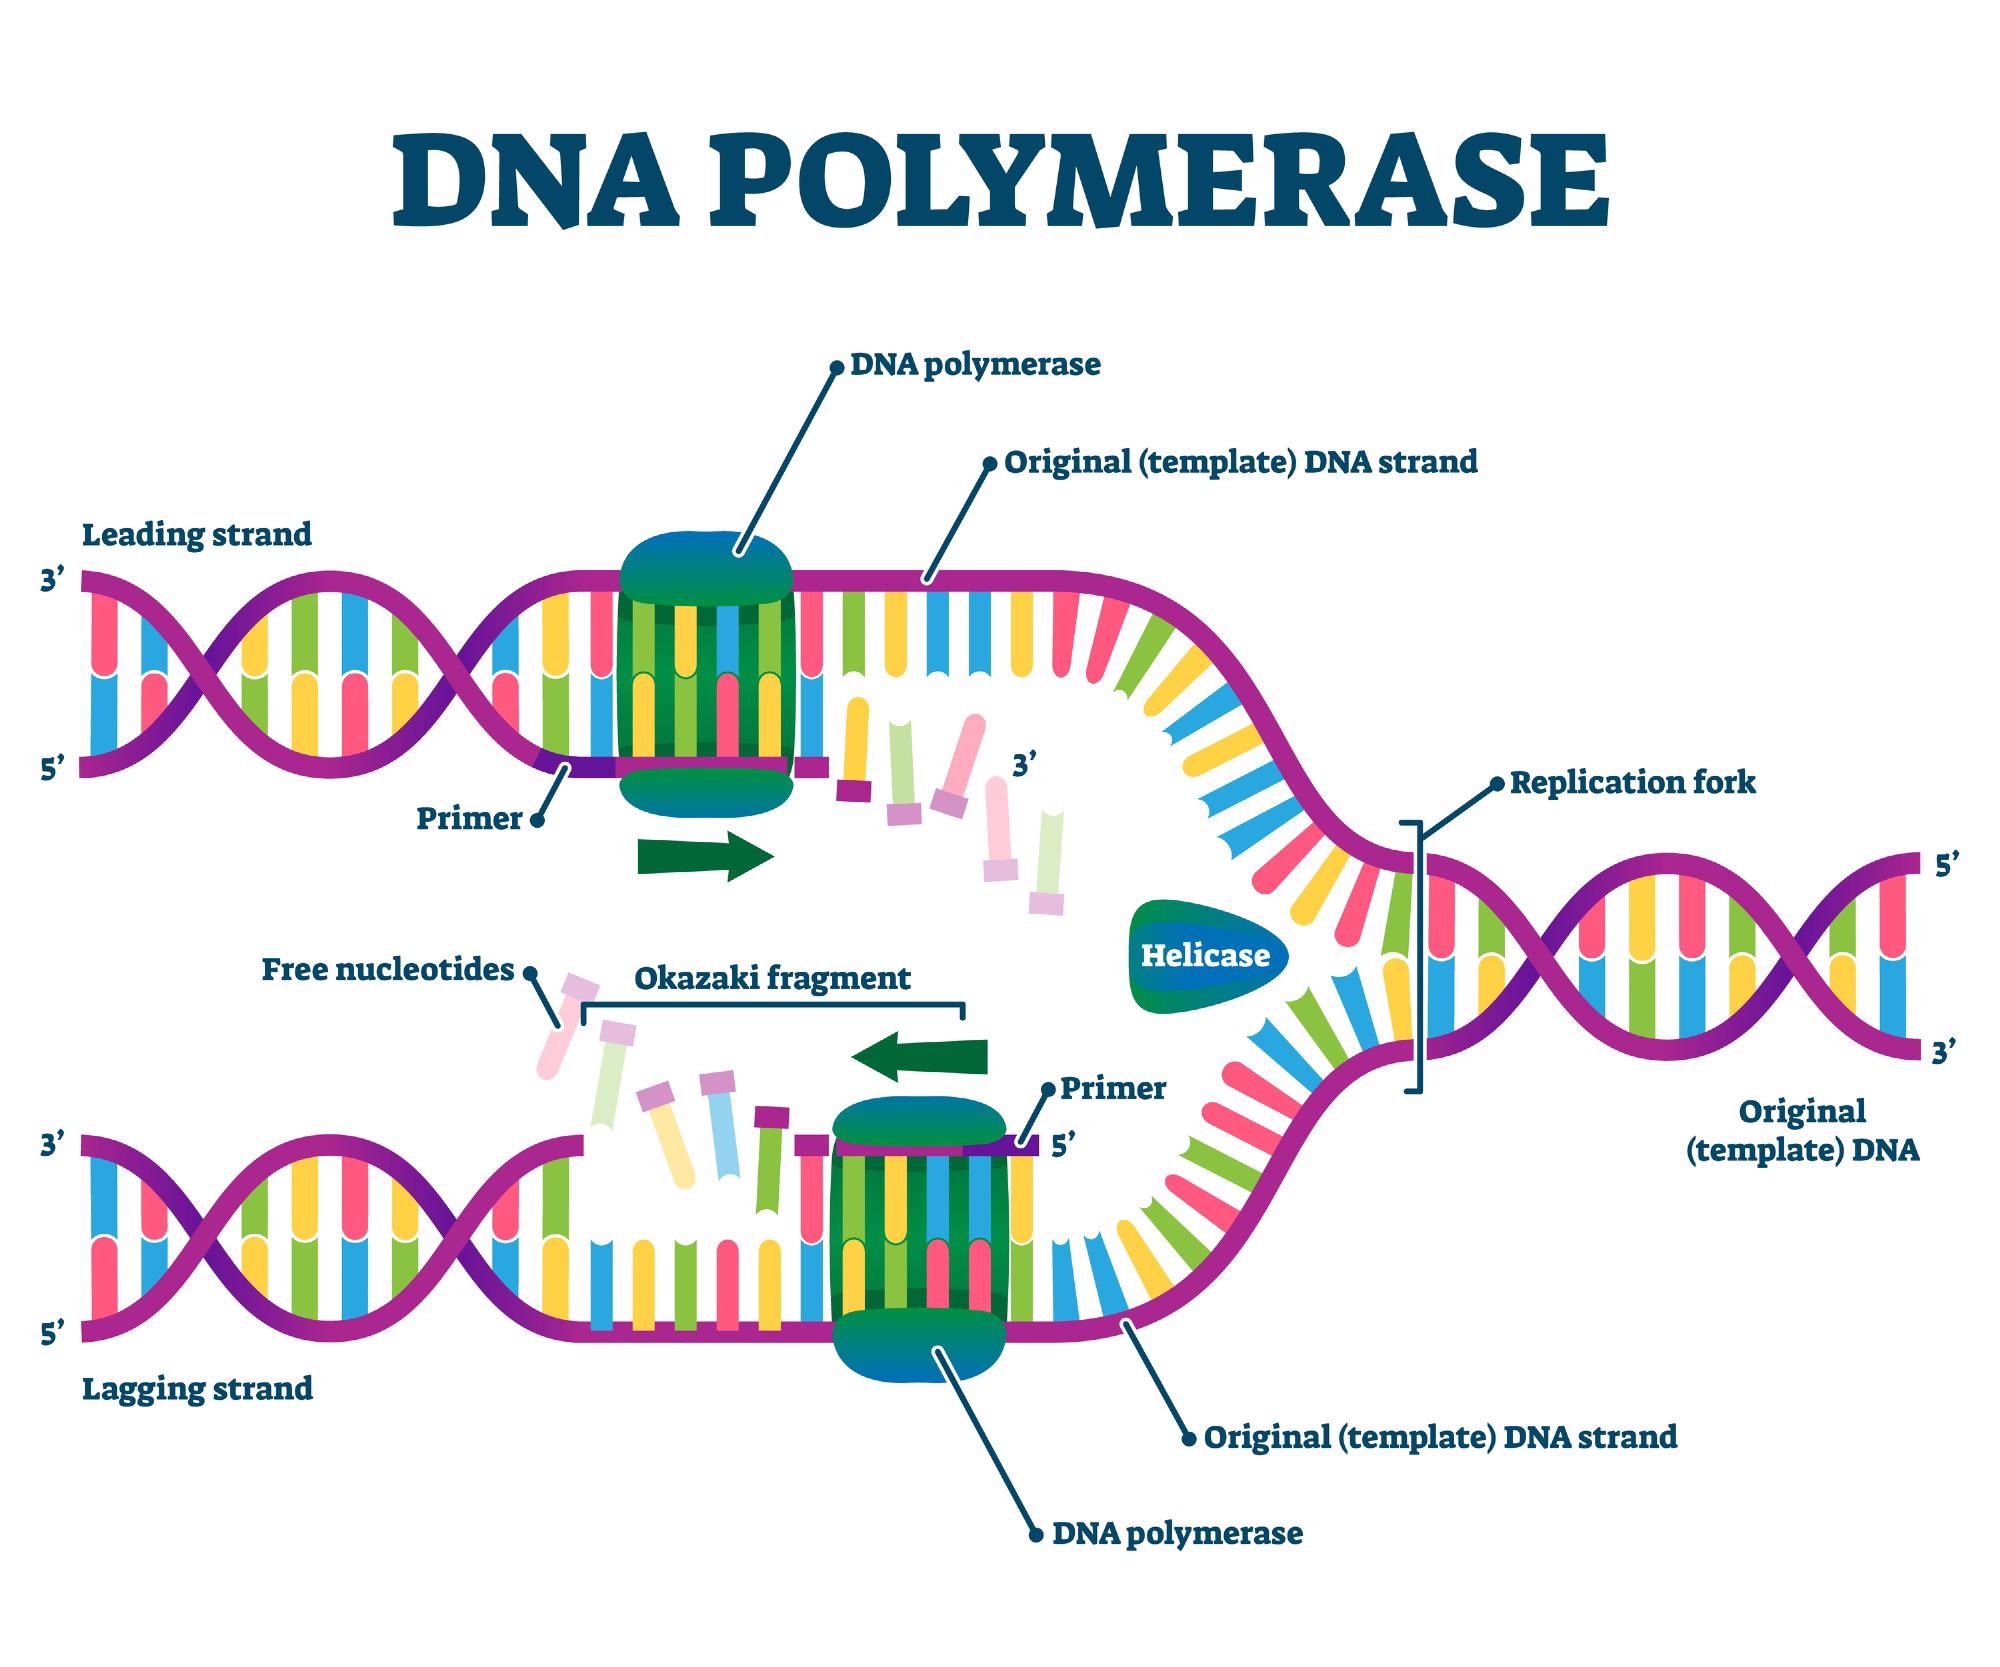
生物が生命を維持し、次世代へと命を繋ぐために不可欠な営みが「遺伝情報の複製」です。ヒトの体内では、日々数千億個もの細胞が新たに生み出されており、その都度、約30億塩基対に及ぶ膨大なゲノムDNAが一分の狂いもなくコピーされています。この生命の根幹ともいえる精密作業を一手に担っている主役酵素が「DNAポリメラーゼ(DNA polymerase)」です。
感染症診断におけるPCR検査から、最先端のクリスパーゲノム編集、長鎖シーケンス技術に至るまで、現代の医療・バイオテクノロジーの現場はDNAポリメラーゼの働きなしには成り立ちません。本稿では、DNAポリメラーゼがなぜ驚異的な精度でDNAを合成できるのか、その分子機構やRNAポリメラーゼとの決定的な相違点、そして研究開発現場における選定基準まで、余すところなく解説します。
📌 【この記事の重要ポイントまとめ】
- 要点1:DNAポリメラーゼは、1本鎖DNAを鋳型として相補的なデオキシリボヌクレオチドを繋ぎ、常に「5'末端から3'末端」の方向へ新鎖を合成する中核酵素である。
- 要点2:ゼロからの合成はできず「プライマー」を必須とする一方、独自の「校正機能(プルーフリーディング)」により10億〜100億塩基に1回という極小のエラー率を実現している。
- 要点3:転写を担うRNAポリメラーゼとの違いや、PCR法で活躍する好熱菌由来の「Taqポリメラーゼ」など、多様なファミリーが生命現象およびバイオ産業を支えている。
【DNA複製の中核】DNAポリメラーゼの基本構造と伸長反応のメカニズム
東邦大学理学部や学術百科事典の定義によると、DNAポリメラーゼとは「1本鎖の核酸を鋳型として、それに相補的な塩基配列を持つDNA鎖を合成する酵素の総称」です。一部のRNAウイルスを除くすべての生物(真正細菌、古細菌、真核生物)に普遍的に存在し、DNAの複製と修復という生命維持の根幹を司っています。
DNAポリメラーゼによる伸長反応の基本原理は非常に明快です。細胞質や核内に存在する基質「デオキシリボヌクレオシド三リン酸(dNTP:dATP, dGTP, dCTP, dTTP)」を取り込み、鋳型DNAの塩基(アデニンにはチミン、グアニンにはシトシン)とワトソン・クリック型の水素結合を形成させます。続いて、既存のヌクレオチド鎖の3'-OH基に対して次のヌクレオチドの5'-リン酸基を攻撃させ、ピロリン酸(PPi)を遊離しながら強固なホスホジエステル結合を形成します。
この一連の反応において、DNAポリメラーゼ単独では複製を開始できません。まずDNAヘリカーゼと呼ばれる酵素が二重らせんをほどいて1本鎖へと解離させ、そこに一本鎖DNA結合タンパク質(SSB)が付着して再結合を防ぎます。さらに、DNAポリメラーゼが結合するための足場となるプライマーの役割(数塩基〜十数塩基のRNA断片)を「プライマー合成酵素(プライマーゼ)」が構築することで、初めて連続的な重合反応が可能となります。
なぜミスなくコピーできるのか?驚異の校正機能(プルーフリーディング)
DNAポリメラーゼの最大の特徴は、その並外れた「複製の正確性(フィディリティ)」にあります。仮にヒトの30億塩基対のコピーで頻繁に重篤なミスが生じれば、細胞はたちまちがん化するか死滅してしまいます。生命がこれほど安定して世代を重ねられる背景には、DNAポリメラーゼが備える多重のチェック機構が存在します。
第一の関門は、酵素の活性中心における「立体構造の厳密な照合」です。正しい塩基対(A-T、G-C)が形成された時のみ酵素ポケットがぴったりと閉じ、化学反応が進む仕組みになっています。この初期選択だけで、エラーは10万回に1回(10-5)程度に抑えられます。
第二の関門が、DNAポリメラーゼ自身に組み込まれた校正機能(プルーフリーディング)です。多くのDNAポリメラーゼは「3'→5'エキソヌクレアーゼ活性」という、いわば分子の“後戻り消しゴム機能”を持っています。万が一誤ったヌクレオチドを取り込んで末端の塩基対がミスマッチを起こすと、合成速度が急激に低下し、DNA末端がエキソヌクレアーゼ活性部位へと移動します。そこで間違った塩基が速やかに切り落とされ、正しい塩基が再挿入されます。
この校正機能によりエラー率はさらに100分の1(10-7)へと低下します。複製完了後に働くミスマッチ修復機構(MMR)と連動することで、最終的なエラー率は10億〜100億塩基にわずか1回(10-9〜10-10)という、人工的な機械すら凌駕する驚異の精度を達成しているのです。
【徹底比較】DNAポリメラーゼとRNAポリメラーゼの決定的違い
生命科学を学ぶ上で最も混同されやすいのが、DNAポリメラーゼとRNAポリメラーゼの違いです。どちらも核酸を合成するポリメラーゼ(重合酵素)ですが、生体内における役割、使用する基質、プライマーの要否、校正機能の有無に至るまで明確な差異が存在します。
| 比較項目 | DNAポリメラーゼ | RNAポリメラーゼ | 編集部の解説・注記 |
|---|---|---|---|
| 主たる生体機能 | DNA複製・DNA修復 | 転写(mRNA, tRNA, rRNA合成) | ゲノム全体の複製か、特定遺伝子の読み出しかの違い |
| 合成する核酸鎖 | DNA(デオキシリボ核酸) | RNA(リボ核酸) | 構成糖がデオキシリボースかリボースか |
| 使用基質 | dNTP(dATP, dGTP, dCTP, dTTP) | NTP(ATP, GTP, CTP, UTP) | RNA合成ではチミンの代わりにウラシルを使用 |
| プライマーの要否 | 必須(既存の3'-OH基が必要) | 不要(de novo合成が可能) | RNAポリメラーゼはゼロからヌクレオチドを連結可能 |
| 合成の方向性 | 常に 5' → 3' 方向 | 常に 5' → 3' 方向 | 重合反応の生化学的特性は両者共通 |
| 校正機能(3'→5') | あり(高精度・低エラー率) | 原則なし(比較的エラー率が高い) | RNAは分解される使い捨て分子のため精度要件が異なる |
臨床遺伝学や分子生物学の観点からも、この差異には明確な進化上の合理性があります。恒久的な遺伝情報の保存庫であるDNAには絶対的な正確性が求められるため、校正機能とプライマーによる慎重な開始機構が必須です。一方で、RNAは必要な時に一時的に合成され、やがて分解される消耗品であるため、多少のエラー(1万塩基に1回程度)よりも迅速に合成を開始できる利便性が優先されています。
5'から3'方向性のジレンマ|リーディング鎖とラギング鎖・オカザキフラグメントの秘密
DNAポリメラーゼには、生化学的に「既存のヌクレオチドの3'-OH基にしか新たなヌクレオチドを付加できない」という絶対的な制約が存在します。つまり、鎖の伸長は5'から3'の方向性にしか進めません。
しかし、DNAの二重らせんは2本の鎖が互いに逆を向いた「逆平行(アンチパラレル)」構造をとっています。複製フォークが一方向へ進むとき、この制約が大きな幾何学的ジレンマを生み出します。この問題を解決するために編み出されたのが、リーディング鎖とラギング鎖という巧妙な非対称合成システムです。
複製フォークの進行方向と同じ向き(3'→5'の鋳型)を走る鎖では、DNAポリメラーゼが途切れることなく連続的に伸長反応を続けます。これが「リーディング鎖」です。
一方、逆向き(5'→3'の鋳型)を走る鎖では、フォークが進むにつれて露出した1本鎖部分に対し、進行方向とは逆向きに短い断片を何度も継ぎ足しながら合成せざるを得ません。この不連続に合成される鎖を「ラギング鎖」、その途切れ途切れの短いDNA断片を、発見者である日本の分子生物学者・岡崎令治・歌子夫妻にちなんでオカザキフラグメントと呼びます。
ラギング鎖では、次のような緻密な連携プレーによって最終的な一本の長いDNA鎖へと仕上げられます:
- プライマーゼが短いRNAプライマーを合成する。
- DNAポリメラーゼがプライマーの3'末端からオカザキフラグメント(細菌で1000〜2000塩基、真核生物で100〜200塩基)を伸長する。
- 別の酵素(細菌のDNAポリメラーゼIや真核生物のRNase H、FEN1など)がRNAプライマーを除去し、DNAへと置き換える。
- 最後にDNAリガーゼがホスホジエステル結合の切れ目(ニック)を糊付けし、完全に連続したDNA鎖を完成させる。
【種類と分類】原核生物からヒトまで多重に存在するDNAポリメラーゼ群
ひと口にDNAポリメラーゼと言っても、生体内には多様なDNAポリメラーゼの種類が存在し、それぞれ複製、修復、組換えといった役割を分担しています。アミノ酸配列の相同性に基づき、Family A, B, C, D, X, Y, RTなどに分類されます。
1. 原核生物(大腸菌など)の主要ポリメラーゼ
大腸菌では主に5種類(Pol I〜V)が知られています。ゲノム全体の複製を猛スピード(毎秒約1,000塩基)で牽引する主役はPol III(Family C)です。一方、世界で最初にアーサー・コーンバーグによって発見されたPol I(Family A)は、5'→3'エキソヌクレアーゼ活性を併せ持ち、ラギング鎖のRNAプライマー除去と修復合成を担当します。Pol II、IV、Vは主にDNA損傷時の緊急修復に関与します。
2. 真核生物(ヒトなど)の主要ポリメラーゼ
ヒトをはじめとする真核生物では、15種類以上のポリメラーゼが同定されています。核ゲノム複製を司る三代主役は以下の通りです:
- Pol α(アルファ):プライマーゼと複合体を形成し、DNA複製の口火を切る短いDNA-RNAハイブリッドプライマーを合成する。
- Pol δ(デルタ):主にラギング鎖の伸長と修復を担当し、強力な校正機能を持つ。
- Pol ε(イプシロン):主にリーディング鎖の連続合成を高速かつ高精度に行う。
- Pol γ(ガンマ):ミトコンドリア独自のDNA複製を担当する唯一のポリメラーゼ。
さらに、紫外線や化学物質によってDNAが損傷した際、通常のポリメラーゼでは停止してしまう部位を乗り越えて合成を継続する「損傷乗り越え複製(TLS)ポリメラーゼ(Pol η, ι, κなど / Family Y)」も備わっており、細胞の破滅的な死を回避しています。
【実態検証】PCR法を革新したTaqポリメラーゼとバイオテクノロジーの現場
DNAポリメラーゼの能力を体外の試験管内で応用し、分子生物学に革命をもたらした技術がPCR法(ポリメラーゼ連鎖反応)です。特定のDNA領域を挟み込む短いDNAプライマーを設計し、熱変性(95℃前後)、アニーリング(55〜60℃前後)、伸長反応(72℃前後)のサイクルを繰り返すことで、わずか数時間で標的DNAを数億倍に増幅します。
初期のPCRでは大腸菌由来のPol Iを用いていたため、毎サイクル95℃の熱変性を行うたびに酵素が失活し、人手で新しい酵素を追加するという過酷な実験作業を強いられていました。この課題を一挙に解決したのが、イエローストーン国立公園の温泉から発見された好熱菌(Thermus aquaticus)由来の耐熱性酵素Taqポリメラーゼです。
大手試薬メーカー(Thermo Fisher Scientificなど)の開発データや先端バイオ現場の知見によると、研究・検査の目的ごとにDNAポリメラーゼの選定基準は明確に差別化されています。
| 酵素タイプ / 代表例 | 主な特徴・スペック | 主な用途 | 現場での評価・注意点 |
|---|---|---|---|
| 標準耐熱性酵素 (Taqポリメラーゼ) | 伸長速度:約1 kb/30〜60秒 校正機能:なし(エラー率約10-4) 3'末端にA(アデニン)を付加 | 定性PCR、感染症コロニーチェック、TAクローニング | 低コストで扱いやすいが、長鎖増幅やシーケンス解析には不向き |
| 高正確性(High-Fidelity)酵素 (Pfu, Phusion, Q5等) | 校正機能(3'→5'活性)を保持 Taq比で50〜100倍以上の高精度 平滑末端(Blunt end)を生成 | クローニング、遺伝子変異導入、次世代シーケンス(NGS)前処理 | 配列の狂いが許されない実験に必須。試薬単価は高め |
| 高プロセッシビティ酵素 (エンジニアリング酵素) | DNA結合ドメインを融合 伸長速度:1 kb/1〜5秒 阻害物質(血液等)への耐性 | 迅速診断(Fast PCR)、超長鎖PCR(10 kb以上)、直接PCR | 反応時間を1/3以下に短縮可能。ハイスループット現場で主流 |
【プロの結論】バイオ研究・検査用途における酵素選定の判断基準
実験系や臨床検査を成功させるためには、「正確性(フィディリティ)」「反応速度(処理能力)」「阻害耐性」のバランスを見極める必要があります。
- 高正確性酵素を選ぶべきケース:プラスミドへの遺伝子組み込み、タンパク質発現用コンストラクトの作成、CRISPR変異の確認など、1塩基の変異も許容されない実験系。
- 汎用Taq・高速酵素で十分なケース:遺伝子型のスクリーニング、バンドの有無だけを確認する定性診断、数多くの検体を数十分で処理しなければならない迅速診断現場。
一般に知られていない盲点とネットの誤解
DNAポリメラーゼに関しては、教科書的な簡略化によってネット上などで誤った認識が広まっているケースが散見されます。代表的な3つの誤解を正しておきましょう。
誤解1:DNAポリメラーゼは「何もない場所」からDNAを作れる?
これは完全な誤解です。前述の通り、DNAポリメラーゼは既存の「3'-OH基」という取っ掛かりがなければ、最初の1塩基を結合させることができません。そのため生体内ではRNAプライマーが、PCR実験では人工設計されたDNAオリゴヌクレオチドプライマーが必須となります。「鋳型と基質(dNTP)を混ぜるだけでDNAが増える」わけではありません。
誤解2:プルーフリーディング機能があれば「絶対にミスは起きない」?
「校正機能=エラーゼロ」ではありません。高度な校正機能を持つ酵素でも、物理化学的な熱揺らぎや塩基の互変異性体(タウとマー)の存在により、極めて稀に誤った塩基を取り込みます。また、DNAポリメラーゼは塩基の繰り返し配列(マイクロサテライト等)でスリップしやすく、挿入・欠失エラーを起こす「スリッページ現象」も知られています。
誤解3:DNAポリメラーゼは細胞内に1種類しか存在しない?
高校生物の基礎では単に「DNAポリメラーゼ」と単数形で習うことが多いですが、ヒト細胞内には前述の通り15種類以上のファミリーが存在します。通常時の複製、UV損傷のバイパス、DNA二本鎖切断の緊急修復など、状況に応じて異なる酵素がピンチヒッターとして交代しながらゲノムの安定性を保っています。
【dna ポリメラーゼ と は】に関するよくある質問(FAQ)
Q1:DNAポリメラーゼが「5'から3'」にしか合成できない生化学的な理由は何ですか?
A1:エネルギー供給の仕組みと校正機能の維持に直結しているためです。5'→3'合成では、新しく入ってくるdNTPが持つ三リン酸からエネルギーを得て結合します。もし仮に3'→5'方向に伸長する場合、成長中の鎖の5'末端に三リン酸が存在することになりますが、校正機能で誤った末端塩基を切り落とすとエネルギー源の三リン酸も一緒に失われてしまい、以降の伸長反応が停止してしまいます。5'→3'方向であれば、誤った塩基を切り落としても鎖の末端(3'-OH)は常に次のdNTPを受け入れられるため、校正と伸長を両立できるのです。
Q2:PCR検査で一般的なDNAポリメラーゼ(大腸菌由来など)が使えないのはなぜですか?
A2:PCRの第一工程である「熱変性」では、二重らせんを一本鎖にほどくために約95℃まで加熱します。ヒトや大腸菌などの常温生物由来の酵素は60〜70℃程度でタンパク質が変性・失活してしまいます。そのため、温泉や熱水噴出孔などに生息する好熱菌から採取された「耐熱性DNAポリメラーゼ(TaqやPfuなど)」でなければ、サイクルを自動で繰り返すことができません。
Q3:DNAポリメラーゼの異常や遺伝的変異はヒトの病気に関係しますか?
A3:直接的に深く関与しています。例えば、真核生物の主要ポリメラーゼである「Pol ε」や「Pol δ」の校正活性ドメインに遺伝的変異が生じると、複製の正確性が著しく低下し、大腸がんや子宮体がんなどを高頻度で発症する「ポリメラーゼ校正関連ポリポーシス(PPAP)」を引き起こすことが解明されています。また、ミトコンドリアDNAポリメラーゼ「Pol γ」の異常は、重篤な筋疾患や神経変性疾患の原因となります。
まとめ:生命の連続性とテクノロジーを支えるDNAポリメラーゼの未来
DNAポリメラーゼとは、単にDNA鎖を伸長するだけの触媒にとどまらず、ナノレベルの極小空間で「超高速な化学合成」と「極めて厳密な品質管理(校正)」を同時並行でこなす生命の最高傑作ともいえる生体分子です。
リーディング鎖とラギング鎖による巧みな逆平行複製の克服、RNAポリメラーゼとの役割分担、そして好熱菌由来酵素の発見によるバイオテクノロジーの飛躍――その分子メカニズムを知ることは、生命科学の基礎理解のみならず、現代の医療診断や先端医療技術を正しく評価するための強力なリテラシーとなります。
タンパク質工学の進化によって、よりエラーが少なく、より伸長速度が速く、過酷な阻害環境でも失活しない人工改変型DNAポリメラーゼが次々と開発されています。極小の酵素が織りなす精緻なメカニズムは、これからもゲノム医療やバイオ産業の最前線を牽引し続けるはずです。 (出典: dna ポリメラーゼ と は(Yahoo!ニュース))
